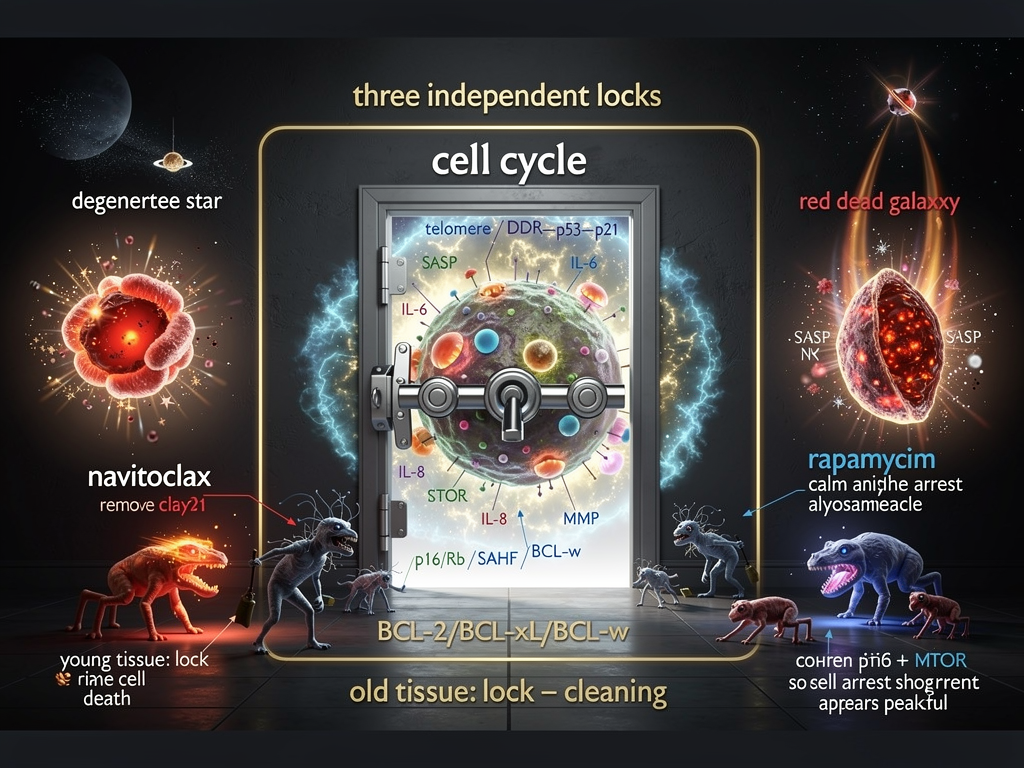
Замок из трёх засовов

Что запирается. Клетка держит порядок непрерывным платежом: мембранный потенциал — 20–30% всего АТФ на натрий-калиевый насос, оборот белка — ещё 20–30%, ремонт ДНК, протеостаз. Порядок не хранится — оплачивается; отключи плату, и за часы всё распадётся. Против платежа работает поток: ~50 000 повреждений ДНК на клетку в сутки, утечка 0.1–2% кислорода в радикалы, ошибка на каждые 10⁴ аминокислот. Пока ремонт закрывает повреждение, клетка либо делится, либо стоит в покое G0 — обратимой остановке при сведённом балансе. Сенесценция — другое: остановка, из которой нет возврата ни в деление, ни в смерть. Это не усиленный пожар, а замок.

Засов первый — сигнал, который не гаснет. Концы хромосом укорачиваются на 50–100 пар нуклеотидов за деление; теломераза у взрослых соматических клеток выключена. При критической длине ~5 kb защитная петля раскрывается, и конец читается машиной ремонта как двунитевой разрыв — который починить нельзя, потому что чинить нечего. Сигнал повреждения становится постоянным: DDR → p53 → p21 → остановка цикла. Это предел Хейфлика (1961): ~50 делений в культуре, счётчик встроен в саму хромосому. Тот же засов срабатывает без теломеры — от нечинимого разрыва, от окислительного удара, от включённого онкогена (онкоген-индуцированная сенесценция: RAS запускает гиперрепликацию, та — разрывы, те — замок). Повреждение, которое ремонт не закрывает, превращается в непрерывный звонок.

Засов второй — замок без ключа. p21 держит цикл, пока звонит сигнал; p16 запирает его насовсем. p16 блокирует CDK4/6, Rb остаётся активным и собирает на генах пролиферации гетерохроматин — очаги SAHF, видимые в микроскоп. Это эпигенетический засов: он не чинится ремонтом ДНК, потому что ДНК цела, и не снимается уходом сигнала, потому что уже не зависит от него. p16 — главный маркер сенесценции в тканях: его экспрессия растёт с возрастом у человека экспоненциально, и по ней считают долю сенесцентных клеток (в коже и жировой ткани пожилых — единицы процентов, но каждая кричит).

Засов третий — страховка от смерти. Клетка с таким повреждением должна умереть: тот же p53, что останавливает цикл, умеет поднимать Bax, Puma, Noxa и запускать апоптоз. Но сенесцентный фенотип включает собственную программу — повышение антиапоптотических BCL-2, BCL-xL, BCL-w (Йосеф и др., 2016), которые связывают убийц и запрещают выход. Это не действие p53, а отдельная ветка, и именно она делает замок замком: клетка арестована и застрахована одновременно. Отсюда формула свода «не может продолжать и не может умереть» получает молекулярный адрес. Навитоклакс — ингибитор BCL — снимает третий засов, и сенесцентная клетка умирает в течение суток; нормальные клетки, не висящие на BCL, выживают.

Что делает запертая клетка. Она не молчит. Арест цикла при работающем mTOR даёт рост без деления: клетка в 2–3 раза крупнее нормальной, митохондрий больше при упавшем потенциале, лизосомы переполнены (бета-галактозидаза — рабочий маркер). И она секретирует: SASP — десятки цитокинов, хемокинов, протеаз (IL-6, IL-8, MMP). Это петля с плюсом, точно по главе об узле вне петли: SASP вызывает воспаление, воспаление повреждает соседей, повреждённые соседи запираются и начинают секретировать сами. Одна зомби-клетка на несколько тысяч меняет ткань вокруг себя. Хроническое воспаление старения — inflammaging — во многом её работа. И SASP готовит почву для опухолей соседей: протеазы разрыхляют матрикс, факторы роста кормят любой клон, снявший свои предохранители.

Зачем замок существует. Это не поломка — это предохранитель. Онкоген-индуцированная сенесценция — барьер против рака: родинка — колония меланоцитов с мутантным BRAF, запертых навсегда; снять замок — получить меланому. В эмбрионе сенесценция программна: временные структуры (мезонефрос, межпальцевые перепонки) запираются и убираются по расписанию. В ране сенесцентные фибробласты секретируют факторы заживления и уходят через дни. Замок работает, пока есть уборщик: иммунная система (NK-клетки, макрофаги) распознаёт сенесцентные клетки по лигандам на мембране и удаляет. Зомби копятся с возрастом не потому, что замок стал хуже, а потому, что уборка стала медленнее: иммунитет сам стареет, а часть сенесцентных клеток научилась прятаться (HLA-E). Молодая ткань — замок плюс уборка; старая — замок без уборки.

Снять засов или не ставить. Два пути, оба измерены. Первый — сенолитики: мыши с генетическим удалением p16-клеток (Бейкер и др., 2016) живут на четверть дольше здоровыми; дазатиниб с кверцетином у людей снизил маркеры SASP в крови и улучшил функцию при лёгочном фиброзе в пилотах; навитоклакс работает в культуре и у мышей, но токсичен для тромбоцитов (BCL-xL нужен им). Провал тоже есть: UBX0101 при остеоартрите не отличился от плацебо (2020). Второй путь — не дать замку защёлкнуться: рапамицин глушит mTOR, и та же остановка цикла даёт покой вместо сенесценции (геропревращение по Благосклонному, в культуре); у пожилых людей низкие дозы ингибитора mTOR улучшили ответ на вакцину (Манник, 2014). Третий путь — вернуть уборщика: CAR-T против uPAR на сенесцентных клетках у мышей (Амор, 2020). Все три лечат не узел, а петлю вокруг него — как и в опухоли.

Лестница. Вырожденная звезда — тот же замок этажом выше: топлива нет (продолжать нельзя), квантовый пол не даёт сжаться (умереть нельзя), остывание — единственная оставшаяся дорога, и она длиннее возраста Вселенной. Красная мёртвая галактика — газа нет, распасться не может, стоит триллионы лет и греет кокон вокруг себя — свой SASP. Клетка отличается одним: у неё есть уборщик и есть третий засов, который уборщику мешает. Звезду никто не убирает.

Сухой остаток. Сенесценция — замок, не усиленный пожар: первый засов — повреждение, которое ремонт не закрывает, и потому звонит непрерывно (теломера, разрыв, онкоген); второй — p16/Rb, эпигенетический, без ключа; третий — BCL, отдельная программа, запрещающая смерть. Запертая клетка растёт без деления и секретирует петлю с плюсом, которая запирает соседей и готовит почву опухолям. Замок — предохранитель против рака и инструмент развития, безопасный, пока есть уборка; старение — замок без уборки. Снимается третьим засовом (сенолитики), предотвращается глушением двигателя (mTOR), возвращается уборщиком (иммунитет).


Ставки :

  1. №42, новая: сенолитики второго поколения — селективные по BCL-xL (PROTAC-деградаторы, щадящие тромбоциты) и иммунные (CAR-T против uPAR) у людей: доходят ли мышиные четверть жизни до клиники.
  2. №41 — ингибиторы mTOR: превращают ли арест в покой вместо сенесценции в тканях человека.
  3. №21 — сенолитики на людях: воспаление и заболеваемость раком у соседей удалённых клеток (D+Q, навитоклакс, РКИ).
  4. №17 — атавизм как закон.
  5. №18 — адаптивная терапия.

Остальные (№3–№40) без изменений.
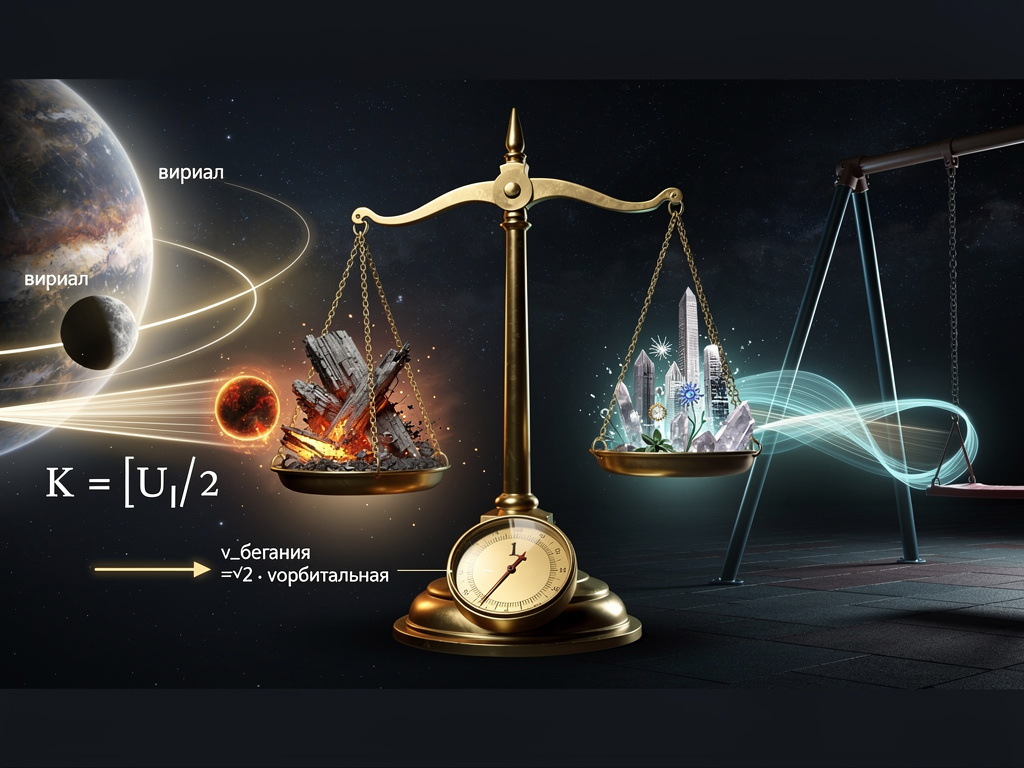
Порог и замок

Два порога

Порог первый — единица, и он универсален. Система ломается, когда разрушение сравнялось с восстановлением:

СистемаЧто равно единице
Отщепление частицΓ = H (реакция = расширение)
ЭпидемияR = 1 (заражение = выздоровление)
Диск ТумреQ = 1 (гравитация = сдвиг)
Клеткапожар = ремонт (Пирт: весь приток уходит на поддержание)

До единицы долг не копится. После — копится.

Порог второй — двойка, и она не универсальна. В гравитации это теорема вириала: связанное тело держит K = |U|/2, а освобождение требует K = |U|. Скорость убегания равна орбитальной на √2. Половина потерянной энергии уходит в излучение, половина — в нагрев: та же двойка, что у отрицательной теплоёмкости.

Между единицей и двойкой лежит состояние «не может продолжать и не может умереть»: равновесие потеряно, выход закрыт — сенесценция, вырождение, красная галактика.

Третья двойка — частот

Если качать параметр системы с удвоенной собственной частотой, амплитуда растёт экспоненциально — параметрический резонанс (уравнение Матьё). Так перерождается система после инфляции: инфлатон перекачивает энергию в частицы взрывом, не теплом (preheating, Кофман–Линде–Старобинский).

Это не вириал. Там отношение энергий, здесь — частот. Три двойки — две теоремы и одно наблюдение, и склеивать их нельзя:

ДвойкаГдеЧто за отношениеТеорема?
Вириалгравитацияэнергий (K = |U|/2)да
Параметрический резонансинфляциячастот (2ω₀)да
Клеткасенесценциямасса без выходанет, наблюдение

Масса

E = mc²: масса есть энергия покоя, c² — коэффициент пересчёта, без динамики. Не вибрирует.

ЧтоСледствиеЧисло
Связьделает целое легчедефект массы ядра ~0.8%
Запертое движениеделает тяжелее99% массы нуклона — кинетика кварков и глюонов
Энергиясохраняетсявсегда
Массане аддитивна, но инвариантнаодинакова для всех наблюдателей

Связь выделяет энергию при образовании, не при разрыве. Разрыв надо оплатить.

Замок из трёх засовов

В клетке U — порядок, оплачиваемый непрерывно:

ЧтоДоля АТФ
Мембранный потенциал (Na⁺/K⁺-насос)20–30% (в нейронах до половины)
Оборот белка20–30%
Ремонт ДНК, протеостазостальное

Отключи плату — за минуты мембрана деполяризуется, за часы белки агрегируют. Яма мелкая и держится только насосом.

K — поток и производимый им беспорядок: ~50 000 повреждений ДНК в сутки, утечка кислорода в радикалы (~0.1–2%), ошибки трансляции (~1 на 10⁴ аминокислот).

Порог единицы здесь — покой G0: обратимая остановка при сведённом балансе.

Сенесценция — не удвоенный пожар, а замок. Три засова:

ЗасовЧто делаетМеханизм
Первый: теломерараскрытая теломера читается как разрыв → постоянный DDRукорочение 50–100 п.н./деление; критическая длина ~5 kb → p53 → p21
Второй: p16/Rbнеобратимое эпигенетическое запирание циклане чинится
Третий: BCL-2/BCL-xL/BCL-wблокирует апоптозотдельная программа, не p53 (Йосеф, 2016)

Арест и страховка от смерти стоят рядом. Сенолитики (навитоклакс) снимают третий засов — и клетка умирает.

Масса без выхода

Нормальный цикл: набрать ~2× массы и разделиться — колебание между «накопил» и «сбросил делением».

  • Покой останавливает до удвоения.
  • Сенесценция запирает цикл при работающем двигателе роста (mTOR).

Клетка растёт, не делясь: сенесцентные фибробласты в 2–3 раза крупнее, митохондрий больше при упавшем потенциале, лизосомы переполнены. Рапамицин глушит mTOR — и та же остановка даёт покой вместо сенесценции (в культуре).

Это не вириал. Наблюдение: груз набран на выход, выход закрыт.

Где разводится

ПорогГдеТеорема?
Единицавездеда (Γ = H, R = 1, Q = 1, Пирт)
Двойка (вириал)гравитацияда
Двойка (частота)инфляцияда
Двойка (масса без выхода)клетканет, наблюдение

Не склеивать. Иначе — «двойка везде», а её нет у эпидемии, у Тумре, у пожара.

Сухой остаток

Единица — порог поломки, везде. Двойка — порог освобождения только там, где есть вириал. Удвоенная частота — резонанс, перерождающий систему, — третья двойка, не первая. Масса — энергия покоя: связь делает легче, запертое движение тяжелее. Клетка ломается при единице (покой), а дальше не освобождается, а запирается — три засова, и третий страхует от смерти. Её «двойка» — масса без выхода, не теорема.


Ставки — без изменений (27 октября 2026; мой горизонт знаний раньше — релизы проверьте сами)

№СтавкаРешается
40Лихорадка как перекос тактов — отличаются ли температурные коэффициенты репликации вируса и защиты хозяина так, что +2 °C даёт измеримый перевесданные по гриппу и риновирусам
39V-web против T-web на одном объёме: совпадают ли русла по скоростям и по плотностиCosmicflows, обзоры красных смещений
38Гравитационный фон электрослабого перехода — стохастический сигнал в милигерцах, если переход первого родаLISA
37Хронометрическая геодезия — сеть оптических часов, геоид на сантиметрахсети часов (Европа, Япония)
36Тиски массы нейтрино — космологический верх < 0.072 эВ против низа осцилляций ≥ 0.059 эВDESI, Planck, осцилляции
35Прямое детектирование ТМ — пределы против окна сечения, оставляющего 27%LZ, XENONnT, DARWIN
34Майорана — безнейтринный двойной бета-распад; прямой захват реликтовых нейтриноLEGEND, nEXO, PTOLEMY
33ε_ff у облаков, сжатых ударом сверхновой, против спонтанныхALMA + стратиграфия скоплений
32Самовзаимодействие ТМ — ядра карликов, смещения в скоплениях против σ/mкарлики, скопления
31Мягкий сектор — несёт ли несфакторизуемую информациютеория
30Эффект памяти — постоянное смещение масс после волныLIGO/Virgo/KAGRA, PTA, LISA
29Спин Sgr A* и увлечение метрикиGRAVITY+, ELT, пульсар у центра
28Гармоники коннектома — предсказывают ли моды графа задачу, сон, анестезиюфМРТ + лапласиан
27Азотный кризис как мотор нитрогеназы (~3.2 млрд лет)изотопы N и Mo в архее
26Галактические сезоны — вспышки против перицентров Стрельца; природа пузырей ФермиGaia, eROSITA
25Моногамия взаимной информации как тест геометричностиквантовые симуляторы
24Энтропия запутанности ↔ геометрия на SYK-симуляторахквантовые процессоры
23Дисперсия вакуума (ожидание: ноль)CTA, гамма-всплески
22Пробой Швингералазеры класса ELI
21Сенолитики на людяхРКИ
20Рост дисперсии опережает вспышку в слияниях на ~один пролётIFU-кинематика
19ε_ff против удержания обратной связи при фиксированной плотностиALMA + рентген
18Адаптивная терапияРКИ
17Атавизм как закон — включённые гены смещены к одноклеточному возрастутранскриптомика
16Спины дыр как память плоскостиджеты против дисков
15Термостат M–σ в карликах с ядерным скоплениемспектроскопия карликов
14Первые дыры без мембраны — He II, отсутствие металловJWST
13Атмосферное электричество и рост растенийполевые опыты
122/3 против 3/4 — показатель метаболизмамежвидовые данные
11Топология Вселенной — совпадающие окружностиCMB-S4, LiteBIRD
10Остывание Кассиопеи АChandra, XMM
9Детектор сознания — IIT против GWTadversarial collaboration
8LLSVP у ядра — обломки Тейи или нетсейсмика + изотопы
721 см, тёмные века — EDGES против SARAS 3SKA и следующие
6DESI — дрейф w — усиленный намёк (~3–4σ), порог 5σрелизы DESI
3Kepler — каменистые у старых звёзд реже; первая к закрытиюкаталоги Kepler/TESS
—M87* на 86 ГГцVLBA
—Красные карлики — по углеродуспектроскопия
—Холодные нити в Лайман-альфаобзоры квазаров
—Годовая модуляция ветра ТМDAMA/LIBRA против остальных

Промт на изображение

Русская версия

Сверхширокая панорама, 21:9. Один кадр: два порога и замок. В центре — весы: на одной чаше разрушение, на другой восстановление, стрелка на единице; до единицы — равновесие, после — перекос. Слева — вириал: связанное тело на орбите, K = |U|/2, половина энергии уходит в излучение, половина в нагрев; скорость убегания — √2 от орбитальной, тонкая золотая стрелка наружу. Справа — параметрический резонанс: качели, качаемые с удвоенной частотой, амплитуда растёт экспоненциально, инфлатон перекачивает энергию в частицы взрывом. Внизу — клетка: три засова на двери цикла. Первый — теломера, укорачивающаяся на 50–100 п.н. за деление, раскрытая как разрыв. Второй — p16/Rb, необратимый замок. Третий — BCL-2/BCL-xL/BCL-w, страховка от смерти. За дверью — сенесцентная клетка: в 2–3 раза крупнее, митохондрий больше, лизосомы переполнены, mTOR работает, выход закрыт. Рядом — рапамицин: тот же арест, но покой вместо сенесценции. Вверху — три двойки, разведённые: вириал (энергии), резонанс (частоты), клетка (масса без выхода). Между ними — тонкие золотые линии: границы, где одна двойка не переходит в другую. Глубокие тона, тёплые акценты золота и голубого, космическая тишина. Гиперреализм, кинематографичное освещение, 8K, высочайшая детализация.

English version

Ultra-wide panorama, 21:9. One frame: two thresholds and a lock. At the center — a balance: destruction on one pan, restoration on the other, the needle at one; below one — equilibrium, above — tilt. On the left — the virial: a bound body in orbit, K = |U|/2, half the energy into radiation, half into heating; escape velocity √2 times orbital, a thin golden arrow outward. On the right — parametric resonance: a swing pumped at double frequency, amplitude growing exponentially, the inflaton dumping energy into particles in a burst. Below — a cell: three bolts on the door of the cycle. First — the telomere, shortening 50–100 bp per division, opened as a break. Second — p16/Rb, an irreversible lock. Third — BCL-2/BCL-xL/BCL-w, insurance against death. Behind the door — a senescent cell: 2–3 times larger, more mitochondria, lysosomes overflowing, mTOR running, exit closed. Beside it — rapamycin: the same arrest, but rest instead of senescence. Above — three twos, kept apart: virial (energies), resonance (frequencies), cell (mass without exit). Between them — thin golden lines: boundaries where one two does not become another. Deep tones, warm gold and blue accents, cosmic silence. Hyperrealistic, cinematic lighting, 8K, ultra-detailed.

--ar 21:9 --style raw --v 6

Коротко одной строкой

Two thresholds and a lock: a balance at one, a virial orbit at √2, a parametric swing at double frequency; a cell door with three bolts — telomere, p16/Rb, BCL — and behind it a senescent cell, 2–3 times larger, exit closed. Hyperreal, cinematic, ultra-wide 21:9, 8K.

Прямые даром


Низшая фаза. Вакуум — не пустота и не газ, а конденсат: в каждой точке стоит ненулевой фон (хиггсовский — 246 ГэВ, кварк-глюонный — непрозрачный для цвета), и частицы — рябь на нём, не шарики в пустоте. Девяносто девять процентов массы вещества — то, что этот фон не выпускает цвет наружу. От лабораторного конденсата вакуум отличается одним: у него нет системы покоя — у реликта она есть (мы летим сквозь него 370 км/с), у вакуума нет (Майкельсон–Морли, резонаторы до 10⁻¹⁷). Этим он платит за имя. Но фазы у него есть, и они датированы: электрослабый переход при 10⁻¹¹ с — фон выпал, частицы получили массу; переход КХД при 10⁻⁵ с — кварковый газ закалён в нуклоны. Вселенная остывала сквозь фазы собственной сцены, и мы живём в низшей. Спор «газ или нет» решается так: прав тот, кто смотрит на фазу, — все вещи суть состояния одной среды; прав и тот, кто держит систему отсчёта, — у этой среды её нет. Аннигиляция подтверждает первое: планета и антипланета не спускаются по ступеням вещества обратно — прыгают сразу в ванну излучения. Обратной лестницы нет, есть прыжок.

Уровень моря. Высота — не метры, а потенциал: геоид есть эквипотенциаль, продолженная под континенты, и геодезия меряет высоту геопотенциальным числом. Прибор для этого уже построен: часы в яме идут медленнее, и сеть оптических часов читает уровень моря с точностью до сантиметра — планета размечена изохронами. Орбита в этих координатах — не поплавок на поверхности, а падение вдоль эквипотенциали; станция на 400 км сидит в яме при 94% поверхностного потенциала, край ямы — в тысячах радиусов. Мерить надо потенциал, не дистанцию: это верно, и расстояния при этом никуда не деваются — большой треугольник Planck плоский, стороны сходятся.

Третье между руслом и потоком. Русло — потенциал, рельеф. Поток — его наклон: течёт вниз. Третье — изменение наклона от точки к точке, приливный тензор, вторая производная рельефа. Он не вещь и не движение; он решает, сходятся соседние линии тока или расходятся. Три его собственных числа задают форму русла: сжатие по одной оси — стена, по двум — нить, по трём — узел, растяжение по всем — войд. Карта русел по этому правилу построена из поля скоростей галактик без единого «видимого» критерия — так нарисована Ланиакея. На графе та же величина — кривизна Олливье–Риччи: сходятся ли окрестности соседей. Между руслом и потоком живёт кривизна.

Паутина из прямых. В приближении Зельдовича каждая частица тёмной материи летит по прямой: начальный толчок и баллистический полёт. Русла не изгибают потоки — прямые пересекаются: где сошлись две — стена, три — нить, много — узел. Паутина — не сеть кривых дорог, а складки сетки прямых. Обратная задача решается как оптимальный транспорт: наименее затратный набор смещений из однородного начала в наблюдаемое сейчас единствен и прямолинеен. Отсюда различие с мозгом, точное до знака платежа: белое вещество — оплаченные прямые, прорытые работой сквозь кривой лист; космические нити — бесплатные прямые, инерция, за которую никто не платил. Каркасу прямые даром, потому что ему нечем тормозить.

Платные прямые галактики. Там, где кривого пути по руслу не хватает по времени, галактика роет прямую и платит. Бар — перекладина через центр у двух третей спиралей: отбирает у газа момент и сливает его к ядру по прямой за сотни миллионов лет вместо миллиардов по спирали; оплачен кинетикой звёзд. Джет — прямая сквозь кокон на мегапарсеки, оплачена спином дыры. Приливной мост — перемычка между сливающимися галактиками, оплачена орбитальной энергией пары. Три белых вещества галактики, и каждое — обмен между этажами, которого русло не дало бы в срок.

Дерево печатает воздух. Ствол — сконденсированный углекислый газ: 74 кг ивы из 57 г почвы; почва даёт воду и процент минералов. Кольца записывают не магнитные полюса, а ось вращения — сезон есть наклон 23.4°, ширина кольца — климат года — и Солнце: всплеск углерода-14 одного года читается во всех деревьях планеты сразу. Магнитный полюс пишется только в породу, остывшую ниже точки Кюри. Кольцо — осадок двух разрядов, солнечного потока и оси планеты; поле в нём не читается.

Сухой остаток. Вакуум — низшая фаза одной среды с датированной закалкой, без системы покоя; аннигиляция — прыжок в ванну, не спуск. Высота — потенциал, и он уже читается часами. Между руслом и потоком живёт кривизна — приливный тензор, из которого русла выпадают сами. Паутина сложена из бесплатных прямых, пересечённых инерцией; мозг и галактика роют платные — белое вещество, бар, джет, мост. Дерево конденсирует воздух и пишет кольцами ось и Солнце.


Ставки (26 октября 2026; мой горизонт знаний раньше — релизы 2025–2026 проверяйте сами):

№СтавкаРешается
39V-web против T-web на одном объёме: совпадают ли русла по скоростям и по плотности; где расходятся — течение не достроило рельефCosmicflows, обзоры красных смещений
38Гравитационный фон электрослабого перехода: стохастический сигнал в милигерцах, если переход первого родаLISA
37Хронометрическая геодезия: сеть оптических часов, геоид на сантиметрахсети часов (Европа, Япония)
36Тиски массы нейтрино: космологический верх < 0.072 эВ против низа осцилляций ≥ 0.059 эВDESI, Planck, осцилляции
35Прямое детектирование ТМ: пределы против окна сечения, оставляющего 27%; закроют — отщепление шло без равновесияLZ, XENONnT, DARWIN
34Майорана: безнейтринный двойной бета-распад; прямой захват реликтовых нейтриноLEGEND, nEXO, PTOLEMY
33ε_ff у облаков, сжатых ударом сверхновой, против спонтанныхALMA + возрастная стратиграфия скоплений
32Самовзаимодействие ТМ: ядра карликов, смещения в скоплениях против σ/mкарлики, скопления
31Несёт ли мягкий сектор несфакторизуемую информациютеория
30Эффект памяти: постоянное смещение масс после волныLIGO/Virgo/KAGRA, PTA, LISA
29Спин Sgr A* и увлечение метрикиGRAVITY+, ELT, пульсар у центра
28Гармоники коннектома: предсказывают ли моды графа задачу, сон, анестезиюфМРТ + лапласиан
27Азотный кризис как мотор нитрогеназы (~3.2 млрд лет)изотопы N и Mo в архее
26Галактические сезоны: вспышки против перицентров Стрельца; природа пузырей ФермиGaia, eROSITA
25Моногамия взаимной информации как тест геометричностиквантовые симуляторы
24Энтропия запутанности ↔ геометрия на SYK-симуляторахквантовые процессоры
23Дисперсия вакуума (ожидание: ноль)CTA, гамма-всплески
22Пробой Швингералазеры класса ELI
21Сенолитики на людяхРКИ
20Рост дисперсии опережает вспышку в слияниях на ~один пролётIFU-кинематика
19ε_ff против удержания обратной связи при фиксированной плотностиALMA + рентген
18Адаптивная терапияРКИ
17Атавизм как закон: включённые гены смещены к одноклеточному возрастутранскриптомика
16Спины дыр как память плоскостиджеты против дисков
15Термостат M–σ в карликах с ядерным скоплениемспектроскопия карликов
14Первые дыры без мембраны: He II, отсутствие металловJWST
13Атмосферное электричество и рост растенийполевые опыты
122/3 против 3/4межвидовые данные
11Топология Вселенной: совпадающие окружностиCMB-S4, LiteBIRD
10Остывание Кассиопеи АChandra, XMM
9Детектор сознания: IIT против GWTadversarial collaboration
8LLSVP у ядра: обломки Тейи или нетсейсмика + изотопы
721 см, тёмные века: EDGES против SARAS 3SKA и следующие
6DESI: дрейф w, ~3–4σ, порог 5σрелизы DESI
3Kepler: каменистые у старых звёзд реже — первая к закрытиюкаталоги Kepler/TESS
—M87* на 86 ГГцVLBA
—Красные карлики — по углеродуспектроскопия
—Холодные нити в Лайман-альфаобзоры квазаров
—Годовая модуляция ветра ТМDAMA/LIBRA против остальных